2024年8月6日火曜日

オオルリボシヤンマの生態(7月下旬~8月初旬)

♂の日周活動(行動) 
 現在、成虫の行動を継続観察しています。昨年の疑問点などを中心に調べていますが、未だ最終的な目的、即ちいつどこで交尾するのかについては糸口すら見えていません😔
 
 8月2日(成熟した個体が最初に池に戻った日から10日目に当たります。)は黎明時の飛翔が4時半過ぎに終了しました。その後パタリと姿を消し、再び池の上に複数の♂が飛来して縄張り飛翔を始めたのは1時間後の5時30分過ぎでした。調査地には5つの池が棚状に連続していて、時間の経過とともに全ての池にそれぞれ1~3頭が占有するようになりました。さらに6時を回るとスギの樹冠部で活発に活動する個体が認められました。この頃になると、池の上でも先住♂に追い出される新規侵入♂が出始め、7時前になると侵入する♂の個体数が増加し激しいバトルが繰り広げられました。勝者は明確ではありませんが、先住♂が縄張りを維持し続けたものと思われました。

 一方、追い出された♂は次第に池の周辺部(林縁や林道上)の一定の空間を占有するようになりますが、時折池の開放水面への侵入を繰り返します。私の思い入れが強いのかも知れませんが、追い出されて林縁部をホバリングを交えながら旋回飛翔する♂を見ていると、何か人間や犬に見られるような感情をトンボは持っているように感じます。激しく追い出された♂の表情(こういう表現が良いかわかりませんが)はかなりの精神的ダメージを受けたみたいで、占有♂が接近してくると、スーと距離をとり目を合わせないような仕草をします。また、池に侵入したいのだけれど、なかなか決心が付かず、躊躇しているような仕草を見せる♂もいるのです。
 黎明時の飛翔終了後から黄昏飛翔がおこなわれる直前まで、池の上で占有行動を示す♂の個体数推移を見たのが下のグラフです。
                   

 縦軸の占有率とは、昨年の観察から5つの池で占有できる最大個体数に対する各時間の総個体数の割合です。私はこれまで漠然と、そのときどきでオオルリボシヤンマの生態を見てきて、本種の習性・生態はこんなものだとしていた概念が、実は♂の日周行動1つを取っても見ても、何一つ具体的なことは分かっていなかったことに気が付きました。
 本種はマダラヤンマと同様に昼にかけて活動が低下し、午前と午後に明瞭な2つの活動ピークをもつこともわかりました。また黎明飛翔終了後と黄昏飛翔が始まる直前では、池での活動が低調になることも分かりました。
 しかしこのグラフからは各池での占有♂と新規侵入♂の闘争の実態・程度が分かりません。ほぼ同時にそれぞれの池での闘争程度を知ることは不可能なので、時間ごとに間接的に池周辺で待機する♂の個体数を数えて、この値で池を巡る♂同士の闘争程度を評価することにしました。

8月9日投稿                                                         
 各池の水域に入れなくて、周辺を飛翔する♂(今ライバル♂とします)は池で占有する先住♂の数が増えるにしたがって、増加することが分かります。この♂たちは隙あらばと先住♂に闘いを挑みますが見事に追い出され、中には完膚なくまで張り倒されてしまう個体もいることは前述のとおりです。観察を続けると、8月8日の午前中にはそれまで15~20mの高さのスギ樹冠部で占有飛翔していた個体が5,6m付近まで降下して旋回飛翔しているのを確認しました。そしてこの中の一部は積極的に池周辺で占有飛翔するライバル♂の占有域への侵入を試みます。

 このような行動から、オオルリボシヤンマにおいて、池で行われている♂同士の激しい争いは一見、無秩序に起きているように見えますが、実は階層(羽化後の日齢・成熟度)ごとに闘争が起きているらしいことが分かってきました。階層は上からスギ樹冠部、スギ中位部、林縁・林道上そして池(開放水面)の順になっていて、池に向かうほど日齢・成熟度が進んた個体となります。それぞれの階層の占有♂はその上の階層のより若い♂からの挑戦を受け、また同階層からのあぶれ♂も絶え間なく侵入してきます。それぞれの階層で占有する♂たちをはたから見てもこれは相当のプレッシャーで、消耗以外何もメリットが無いのではと思えてきます。こんなことを毎日続けていてはたまらんだろうと思います。とにかく、この時期までにメスなんかまったく飛んでこないのですから。なぜ♂たちは激しい闘争を行いながらも占有飛翔をするのか全くわかりません。
   

つづく


2024年7月23日火曜日

また地獄のオオルリボシヤンマ観察始まる(パソコンで読んでください)

 7月23日までの観察で新たにわかったこと
 また私にとって、悶々とする季節が始まりました。今年こそ何とかならないもんかねえ。今年も待ったなしで難敵オオルリボシヤンマの羽化時期を迎えました。
 今のところ、昨年とほぼ変わらない時期に始まった羽化はいよいよ終盤に入り、♀の比率が高まってきています。
                 
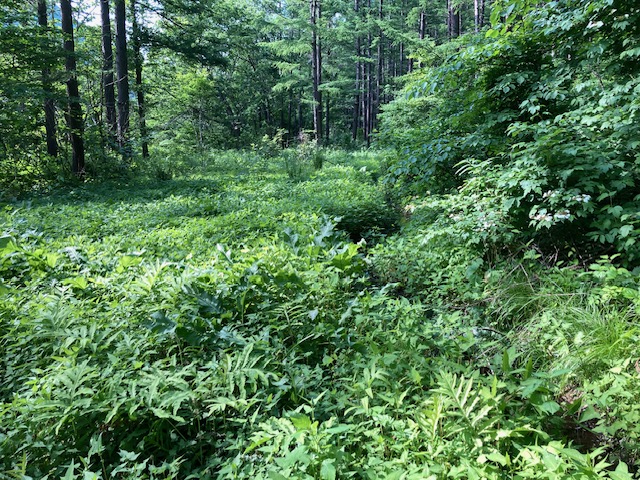
                   観察地景観 段々に5つの池がある

 さて、羽化期間(昨年だと20日間)の前期までは羽化した池に終日、本種の姿は見られません。しかし、7月18日(今年の羽化開始は7月8日)の15-16時の間に初めて2頭の♂が池の中や周辺を高速で飛び回り、すぐに姿を消すのを目撃しました。以後、午前、午後を問わず不定期に2,3頭の♂が同様の飛翔をおこなうようになりました。これは採餌のための飛翔ではなく、飛翔能力を高めている、いわば訓練?を行っているように思えました。どの程度の熟度か捕まえてみたかったのですが、何時飛んでくるか全く予想できず、また飛び方が速くすぐに居なくなってしまうため捕獲出来ませんでした。

 つぎに羽化期間における未熟個体の黎明、黄昏の飛翔を観察してみました。まだこれは途中なのですが。翌日の19日の観察では早朝4時過ぎに最初の個体(多分♂)が飛び始め、すぐに数匹に増えました。最初は池、周辺を明らかな採餌を目的とした飛翔で上下動が大きいやや俊敏な飛翔でしたが、やがて池上空2,3mを非常に高速で飛び回るようになりました、これはさほど長い時間ではなく、黎明時の飛翔は約40分続きました。高所を飛び回る個体はありませんでした。
 一方、その日の黄昏飛翔は19:00から始まり20分続きました。飛び方は黎明の時とは異なり、池の水面上50cm以下を行きつ戻りつする個体と上空1~2mを飛ぶ個体が見られました。そこでそれぞれを捕獲してみると、成熟度が異なることが分かりました。
                    

 写真の上の方が黄昏時、水面低く飛び回っていた個体、下が池の上空を飛んでいた個体です。下はかなり成熟度が体色に関しては進んでいることが分かります。また写真にはあげれませんでしたが、この日は羽化後間もないようなまだ体や翅が柔らかい個体も複数得られました(これも水面低く飛び回っていました)。
 一見いろいろな日齢の個体がごちゃ混ぜに飛んでいるように見えましたが、オオルリボシヤンマは日齢ごとに飛ぶ高さをそれぞれ変えて(干渉を避けて?)飛んでいることが分かりました。
 これらの個体がこの池、地域で羽化したのかは不明ですが、案外、本種は羽化後あまり羽化地を離れず、周辺の森で過ごし、周辺で朝夕活発に飛翔活動しながら成熟するのかも知れません。


2024年6月24日月曜日

生態学の理論を実証するアオモンイトトンボ(2)

 (2)何が分布境界(北限)を決めるか

 さて、前述したアオモンイトトンボになぜ分布北限ができるのかについてですが、このことに関して、トンボ以外の昆虫をも含めて、具体的なデータを示した議論は非常に少ないとうことが分かりました。アオモンイトトンボを検索すると必ずヒットする東北大学の高橋佑磨さん(現在筑波大学教授)が行った研究 ( Takahashi et al., 2016 ) をここで紹介し、なぜ分布境界線ができるかについてみていきたいと思います。

 まず論文では高橋さんは全国各地のアオモンイトトンボを収集して、その遺伝子の多様性を調べる一方、個体を計測して腹長および翼面荷重と緯度との関係を調べました。その結果、下に転載する図のように緯度が高くなるにつれて遺伝子の多様性が失われ、さらに翼面荷重が大きくなって飛びにくくなることが分かったとしています。特に緯度が北緯35°辺りから両形質が急激に変化することを突き止め、この緯度付近に分布境界線ができるのだろうと推察しています。
 一方、この研究では同属で分布が全国的なアジアイトトンボを比較対照で用いています。アジアイトトンボは各地域の温度適応が出来ていることから、遺伝子の多様性は緯度が高くなっても失われることがなく、また翼面荷重が高まる事もないことから分布境界線は見られないと述べています。
  この論文は下図にあげる基本的な論理に基づいて考察されています。この生態学的な論理は数学的な考えから導き出されていて、特に数に弱い私にはその式の意味は分かりません。
                   
                           Takahashi et al., 2016 より 

  図の説明の部分には専門用語( 例えば migration load: 分散荷重、founder effects: 創始者効果=ある個体群から新しい個体群が分かれた時、その個体群の個体数が非常に少ない場合、元の個体群より遺伝子の多様性が少ない個体群が出来ること)、があって単に訳しては意味が分かりませんでした。特にAの図はこの論文の骨子となる非常に重要な考えになりますので、変に訳したのでは問題かと思い、そのまま載せました。緯度や標高でトンボに影響する最も大きな因子は温度であることは疑いないことであると思います。それによって遺伝的多様度も高まったり低くなったりすることもあるのでしょう。ただ、翼面荷重が高まって飛びにくくなるとはどういうことなのでしょう?このことが分布拡大を妨げる要因となるのでしょうか?翼面荷重が高まって飛びにくくなったアオモンイトトンボの本来の行動が根本的に変わったりすることはあり得ないと思います。むしろ翼面荷重の点で考えれば、高速性が高まりますからある意味、逆に速く遠くに飛べて分布拡大に寄与するのでは?遺伝的多様性の減少は逆に厳しい環境への対応のため、必要な機能をより選抜・強化しているという考えは成り立たないのでしょうか?この論文では遺伝子の多様性や翼面荷重の違いが地域ごとのアオモンイトトンボの行動に及ぼす影響が示されていない点が気になります。
 とにかく分布北限(あるいは南限)がどうしてできるのか、何も知らなかった私にとって、こうした考えがあるのかということでとても共感できました。多分、アオモンイトトンボに見られる♂型メスの存在とその繁殖生態も今回の研究(分布境界はなぜできるのか)に深く関係しているのだろうと思います。
 トンボ好きの人でも生態学を学問として本格的に学んだ人は非常に少ないのではないかと思います。この論文はアオモンイトトンボという、なじみの深いトンボを対象にして、分布を妨げる要因が何なのかを明らかにしようと試みています。トンボ屋としても興味が持たれる事だと思いますので自分なりに考えをめぐらすのも、トンボを知る上で時として必要なことではないのかなあと思いました。
                   
                 緯度と遺伝子の多様性との関係 (Takahasi et al., 2016より)
                (A~D): アジアイトトンボ, (E~H): アオモンイトトンボ, 縦軸が異なる
                分析法による遺伝子の多様性指数, 横軸が緯度

          アジアイトトンボとアオモンイトトンボの腹長と翼面荷重の比較
         (A~B): アジアイトトンボ, (C~D): アオモンイトトンボ, 緑が♂, 赤が♀
           水色が♂型の♀ (Takahasi et al., 2016より)

引用文献
YUMA TAKAHASHI et al. (2016) Lack of genetic variation prevents adaptation at the
geographic range margin in a damselfly. Molecular Ecology 25: 4450-4460.


2024年6月9日日曜日

新緑の森にヒメクロサナエとモイワサナエを訪ねて

ヒメクロサナエ
 福島県におけるヒメクロサナエとモイワサナエはほぼ全県下に分布しています。ヒメクロサナエはムカシトンボが生息する山地の源流域から丘陵地の河川上流部まで広く見られ、一方のモイワサナエは山地の湿地や水路に見られます。新緑のころ、山間部の湿地を流れる細流の最上流部を訪れると、もはやそこは岩が蘚苔類に覆われ、淡い光の中、一面緑の桃源郷のような感覚に陥ります。
 ヒメクロサナエはそのような細流脇の湿った、表現が難しいのですが、木陰になる数十平方cmほどの、植物がほとんど生えていない礫~泥状の地面に♀が飛来して産卵します。                 
                      最上流域の景観 
                       
     まだ若い♂(21/05/2018 いわき市)

                  産卵場所 多くの♀が産卵にやってくる場所(赤丸)

 ♂は細流脇のフキやウワバミソウなどの低い位置の植物の葉や、流れの中の石などに止まって♀の飛来を待ちます。♂たちは次第に♀の産卵場所周辺に集まってきます。上の写真では、足跡が付いている部分が水深数cmの流れです。赤の楕円内が産卵場所となり、その場所はわずかに傾斜していて細かい礫の上に蘚苔類が繁茂していています。奥は斜面になっていて、そこから絶え間なく水が浸み流れています。
 ♀はかなり♂の監視の密度が高いにもかかわらず、頻繁に産卵に訪れますが、捕捉されることは少なく、午前中、飛来回数が多いような印象を持ちます。交尾は何回か目撃しましたが、いずれも産卵に飛来した♀が途中で捕捉されたもので、全て樹上に上がってしまい私はまだ詳細を観察したことがありません。
 本種の産卵は非常に特異で、全サナエ中、産卵管を直接地表面に付けて産卵を行うのは、本種の他に北米大陸に分布する Lanthua parvulus と L. vernalis の2種しか知られていません。両種ともヒメクロサナエと変わらない姿をしています。最近、私はラオスで Davidius fruhstorfer という小型のサナエトンボの産卵を観察しました。ダビドサナエ属のトンボですから、ホバリングしながらの放卵かと思っていたら、いきなり湿った斜面に着地して産卵を始めました。こんな産卵はヒメクロサナエだけだと思っていましたから(産卵の写真はこのブログの裏ブログとして作成している Dragonfly research in Laos の 「Davidius Mystery (1)」2020年10月掲載から見ることができます)、大変驚きました。
                    
                流畔のウワバミソウで♀を待つ♂(01/06/2024 いわき市)
                        
                    木漏れ日を
受けて葉上に静止する( 同)

         ヒメクロサナエの産卵 尾端が地面に接している様子が毎回うまく撮れない (05/06/2024) 
                                                                    
                                                                          
                                                                               同上
                          
                      産卵 (01/07/2020、南会津町)

モイワサナエ
 ヒメクロサナエの生息地にほぼ重なるように、最上流のモイワサナエは写真のような環境に生息しています。一般的にはメインの発生地はもう少し下流で、少し開け明るい湿地の中を流れるような環境に個体数は多いように思います。
                   
                        最上流部の生息環境
                        
                   一般的な生息地、少し下流の湿地内を流れる
 
 南会津町の生息地は、標高750mの渓流脇の林道沿いの樹林に囲まれた湿地です。その中を幅40cmほどの浅い細流が穏やかに流れています。所々樹林がまばらになって、明るい林床が広がる場所があり、それらが山地性のモイワサナエの生息地になります。流れの中や流畔の大小の石の表面は完全に苔むして、一帯に木漏れ日が落ちる環境です。観察に訪れた6/8の場合、朝から快晴で8:30(気温18℃)にはすでに複数の♀がそうした苔むした石の上に飛来して産卵をおこないました。産卵には♀のお気に入りの決まった場所があって、何頭もの♀が同じ石の上で産卵します。最盛期には、複数の♀が放卵した卵がコケや小さな植物の葉の表面に集まってオレンジ色の粒々となって見られます。
                    
             産卵が集中する流れの中にある苔むした石、中央に♀が産卵飛翔中
                          
                ホバリングしながら放卵する. ホバリングする時間は短い
                          
                          少し若い♀の産卵
                          
         ホバリングしながらの産卵は疲れるのか, すぐに止まり, また飛び立って産卵を続ける
                         
                       産卵は1分以上続くことも多い

 しかし♂はいっこうに現れず、9時過ぎに漸く流畔の葉の上に姿を見せました。ここでは陽が射さないと♂♀とも姿を見せません。陽が射すと樹上から降りてきます。開放的な湿地の個体と違って、この樹林内のモイワサナエは非常に敏感で、♂は特に待ち伏せ場所となる流れ内の石や、水面近くの葉などに飛来した直後は少しの動きで、再び樹上に上がってしまします。良く観察しているつもりでも、いつの間にか足元や直ぐ近くに飛来していて、♂どうしの争いに飛び立って初めて気が付くということが度々ありました。♀は大体産卵場所付近に飛来した時、♂に捕捉されることが多いようで、水面や流れ脇の茂みに団子状態となって落下します。そうしたペアはすぐに交尾態となって樹上にあがってしまい、まだ交尾行動を観察したことはありません。
                    
                     木漏れ日射す石の上で♀を待つ♂がみられる
                          
         
                          ♂を拡大してみる
                         
                       畦畔のイラクサの葉上で♀を待つ

                     産卵のために飛来した♀を
捕えた♂

 観察している細流は山肌から浸み流れる水や小さな沢からの沢水が集まったもので、流長はせいぜい200mほどです。ここのモイワサナエはこれまで述べてきた樹林内の個体群と、その下流の明るく解放的な湿地に住む個体群の2つがあって、樹林帯の個体は湿地のそれに比べ、大きさがかなり小さいことが分かりました。おもしろそうなのこの辺に注目して観察を続けたいと思います。


2024年1月31日水曜日

ミルンヤンマ、アオヤンマ、ネアカヨシヤンマ、そしてヤブヤンマの学名が変更になった!

(このブログはパソコンで読んでください。携帯では文字化け行づれが起こります。)
 先ごろ行われた日本トンボ学会で、トンボ界を代表する若い講演者がクイズ形式で最近のトンボ事情を面白おかしく発表されました。その中にミルンヤンマの学名変更の話があったような気がしました。あまり事の重大さを感じずにその時は終わってしまっていました。帰宅してからパソコンのメールを整理していたら、ロシアの Kosterin氏から別刷りが送られていたことに気が付きました。読んでみるとミルンヤンマの学名変更に関する論文でした!あ、これかっ、と。

 この論文は良くまあ、ここまで調べたものだと感嘆する内容です。結論から言えば、要は命名法に従うとこれまでのミルンヤンマ属 Planaeschna は Aeschnophlebia 属の subjective synonym (主観異名)となり、これによって従来のPlanaeschna 属の種は全て、Aeschnophlebia 属に移り(Kosterin、2023)、一方 Aeschnophlebia属に属していたアオヤンマ、ネアカヨシヤンマは分子系統分類学的に類似性が高いBrachytron 属に、それぞれ Brachytron longistigma (Selys, 1883)、Brachytron anisopterum (Selys, 1883) として移されたのです( Schneider et al. ,2023、国際命名規約によって赤の部分にスペルが変更されているので注意)。
  Kosterin氏が作成した新しいミルンヤンマ属の表を論文から抜粋して載せます。
 
               
                       KOSTERIN (2023)より 
                 表をクリックすると大きくなります

 この論文は戦後の昆虫界をけん引した、昆虫雑誌「新昆虫」に連載された朝比奈正二郎博士の
日本の蜻蛉(1957年)を Kosterin氏が読んだことが発端となって作成されたようです。実は、これにはミルンヤンマの項で非常に興味深いことがらが記述されていたのです。
 1883年に de Selys Longchamps, E.は「日本のトンボ」という題目で計67種のトンボを報告しています(Annls Soc. Ent, Belg. 27: 82-143.)。この論文では数種の新種の中にAeschnophlebia optata という♂のアオヤンマの仲間を記載しました。また同時に同属でアオヤンマとネアカヨシヤンマも新種として報告したのです。ということは日本にはその時点でアオヤンマ属のトンボが3種が居たことになります。A.optata は記載文からはその特長がつかめず、長らくトンボの研究者を悩ましました(時としてヨシヤンマなどの和名で呼ばれたりしました)。

 しかしこの問題は朝比奈博士が1953年にブリュッセルの博物館を訪れたことで氷解しました。Selysコレクションの中にあるoptata のタイプは何とミルンヤンマだったのです。ただそれによって起こる分類学的な処置まではさすがの博士も気が回らなかったようです。当時新な図鑑作りに奔走していた博士は日本産トンボリストから単にAeschnophlebia optataを削除することだけで分類学的な処置には手をつけることはなく終わってしまったのです。

 一方のミルンヤンマは同じ文献に、これも新種として Aeschna milnei の学名で記載されています。その後 McLachlan (1896) は A. milnei 1種のためにPlanaeschna 属(ミルンヤンマ属)を起こし、ここに A. milnei を移しました。これが今回の属名変更の火種(?)となりました。朝比奈博士があの時点でoptata をmilnei のシノニムとして処理していれば、Planaeschna 属は残ったと思います。
 Kosterin氏は 新昆虫を読んでAeschnophlebia optata Selys, 1883は Aeschna milnei Selys, 1883のシノニムであり、未だに処置されていないことに気が付いたようです。さらに Aeschna milnei はその後 Planaeschna 属に移されていますから、Aeschnophlebia optata は未だに有効種名として残った状態にありました。そこで、彼はこれらを命名法に従って処置したわけです。
  Planaeschna milnei McLachlan, 1896 と Aeschnophlebia optata Selys, 1883 は共にミルンヤンマですから、属名Aeschnophlebiaが先取権によって残り、Planaeschnaは消えることになります。milnei は Aeschnophlebia milnei (Selys, 1883)となって、 Aeschnophlebia optata Selys, 1883 がシノニムで消える処置がされました。ここでようやく、Selysが1883年に発表した日本のトンボの中のミルンヤンマ問題が解決したのです。

 ですが、Planaeschna 属のトンボが大挙して Aeschnophlebia 属に移ることはアオヤンマ属としてあったアオヤンマ、ネアカヨシヤンマはどう扱うのかという問題が生じます。
 Selysの論文では optata はAeschnophlebia 属のタイプですから、アオヤンマとネアカヨシヤンマは他の属か新属を起こして移らなくてはなりません。しかし時期同じくしてSchneider et al. , (2023) が新たにヤンマ科の分子系統分類の研究をおこなって、アオヤンマとネアカヨシヤンマを Brachytron 属に移す処置をしていました。何といいタイミングでしょうか。この Brachytron 属は B. pratense というのがヨーロッパに居て
(ちょうど♂はアオヤンマ、♀はネアカヨシヤンマを小さくしたような種です)、
朝比奈博士もかねて、この属とAeschnophlebia 属は関係が深くヨーロッパと極東における地域的な置換種であるようなことを述べていますから、まあ落ち着くところに落ち着いたわけです。
 このことから日本産ミルンヤンマ、アオヤンマさらにネアカヨシヤンマの学名は下のようになりました。この結果、再び文一出版「日本のトンボ」は改訂版を出す必要性がでてきたわけです。こうしょっちゅう学名変更が起きては買う側としてはたまりませんね。

2/3追記、 うっかり忘れていました。Schneider et al. , (2023) ではさらにヤブヤンマの属名 Polycanthagyna  Fraser, 1933 も 属名 Indaeshna Fraser, 1926 のシノニムとなり、日本のヤブヤンマは新たに Indaeshna melanictera となります。Indaeshna 属は東南アシアを主に5種知られています。    

ミルンヤンマ=Aeschnophlebia milnei (Selys, 1883)
アオヤンマ= Brachytron longistigma (Selys, 1883)
ネアカヨシヤンマ= Brachytron anisopteum (Selys, 1883) 
ヤブヤンマ=Indaeshna melanictera ( Selys, 1883)


引用文献

朝比奈正二郎 (1957) 日本のトンボ 12. 新昆虫, 東京, 10(8): 49–55.
Selys Longchamps, E. (1883) Les Odonates du Japon. Annls Soc. Ent, Belg. 27: 
   82-143. 
Kosterin, O. E. (2023) Nomenclatural reconsideration of the genera  
   Aeschnophlebia Selys, 1883 and Planaeschna McLachlan, 1896 (Odonata,  
   Aeshnidae). Zootaxa, 5353 (5): 495–500.
Schneider, T., Vierstraete, A., Kosterin, O.E., Ikemeyer, D., Hu, F.-S., Snegovaya, N.  
   &  Dumont, H.J. (2023) Molecular phylogeny of Holarctic Aeshnidae with a focus  
   on the West Palaearctic and some remarks on its genera worldwide (Aeshnidae,
   Odonata). Diversity, 15: 950. https://doi.org/10.3390/d15090950


2024年1月27日土曜日

オツネントンボの越冬に関する最後の観察

 オツネントンボはいつどこで越冬に入るか

 これが最大の関心事です。以前のブログでは標高700mの山地での越冬を集団越冬の形で観察してきました。しかし、平地での本種の越冬生態は少し事情が違うようです。12月9日この日は非常に暖かく、朝6時は0℃でしたが、昼には16℃に上昇しました。午前10時に気温はまだ9℃だというのに生き残っているアキアカネは相変わらず交尾して、交尾後繋がったまま迷うことなく南の方角に飛び去りました。しかし付近の田んぼを見て回りましたが、産卵しているペアはどこにも見当たりませんでした。
 さて、12月5日にはほとんど姿を見なかったオツネントンボが、この日は斜面にかなりの数が見られました。どこから出てきたのか不思議です。可能性は低いと思いますが、もし樹上で越冬するならお手上げです。
                   
                   この倒木の周辺にオツネントンボが集まる. 12/9

 この越冬地をもっと詳しく見てみることにしました。雑木林の縁に当たるこの場所は水田 
わきの農道に接していて、急な斜面になっています。トンボはこの斜面に見られるのですが、良く見るとそのオツネントンボは極めて限られた場所に見られることが分かりました。斜面のどこにもいるものだと思っていましたが、この日は上の写真に示す、倒木のある一帯に集まっているのです。そういえば、以前山間地の観察では越冬場所周辺の密度が越冬直前に最高になったことを忘れていました。とすれば、この倒木が越冬地になっているのでは?集団越冬の観察では昼にかけて越冬場所に飛来して、そこから歩いて隙間に入り込むことがわかっていますので、昼前に観察してみました。
                     
                    
                       倒木に飛来するオツネントンボ

 オツネントンボは11時頃から頻繁に倒木に飛来するようになりました。飛来した個体はしばらくすると倒木の上を歩きだし、体が入りそうな割れ目を探すしぐさを見せ、中にはスーと入ってしまう個体もありました。しかし、その場合でもすぐに出てきて、他の個体同様1,2分で飛び去ります。それらの個体は倒木からさほど離れていない(1~3m)場所の笹竹の根元に静止し、午後2時ぐらいまで、倒木や周辺の斜面の樹木のひこばえなどに飛来・移動を繰り返します。
 この状況は山間部の集団越冬を観察した時の状況に非常に似ていました。この状況だと倒木の割れ目に入り込んで越冬するにはまだしばらくかかりそうに思います。その間トンボたちは連日倒木に飛来しては、越冬場所となる割れ目を値踏みしているように思えます。何か考えて行動しているようにどうしても思えてしまいます。
                    
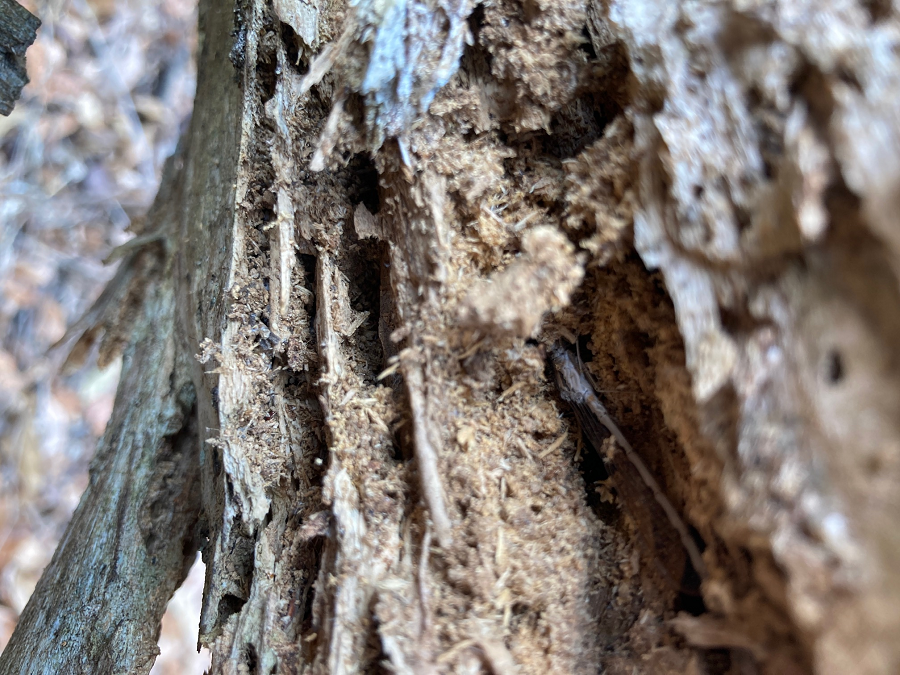
               オツネントンボが越冬していたマツの朽木(自然倒木)
 
  12月21日、この日は朝の気温が前日と同じ-5℃となり本格的な冬の季節となりました。オツネンはどうしたかと、現地に行ってみました。相変わらずの風景、何も変わらないように思いました。予想はしてましたが、オツネントンボはもう斜面にはいません。どこに行ったのか、朽木の割れ目を覗いてみてもそれらしい姿はありません。いよいよ分からなくなってしまいました。しょうがないので帰るしかないかと、マツの倒木(完全に朽ちている)をまたいだ時に、うっかり幹を蹴ってしまい、樹皮が剥がれ落ちちしまいました。樹皮が落下したした幹に、あれっ、オツネントンボが顔を出しているではありませんか!
                    
             ドライバーで突き崩した木質部から現れた越冬中のオツネントンボ
 
 樹皮下の材は穿孔性昆虫によって完全に食い尽くされていて、その孔道内に完全に身を潜めています。樹皮はかなりの材を伴って落下してます。オツネントンボは少なくとも樹皮下2~3cmの材部と結構深く入り込んでいるわけで意外でした。どうりで表皮を剥いだぐらいでは見つからないわけです。
 そこで表皮を剥いで材部を崩していくと、次々に越冬中の個体が見つかりました。
                   
                   
        コツが分かると次々に見つかる。一番下は表皮から5cm以上も深い場所で越冬する個体

 ほとんどが単独、あるいは2頭ぐらいでいることが多く、いわゆる何10頭も固まって見られることはありませんでした。このマツの朽木で何10頭もいっしょに入れるほどの大きな食孔は無いのかも知れません。
 さらに類似の環境で、倒木となった主にマツ、スギの朽木を同様に表皮から数センチの深さの木質部に出来た孔道をバールで慎重に崩しながら調べていくと、写真にあるような環境のもとにオツネントンボが越冬している姿を確認しました。やはり、オツネントンボの自然状態での越冬場所は日の当たる場所に倒木となった朽木で、表皮から数cmの深さにある穿孔性昆虫が穿った食孔の中で越冬することが分かりました。もちろん朽木の割れ目なども越冬場所になるのでしょうが、相当深い割れ目でないと越冬には向かないと思います(表面からは数センチの深さがある割れ目)。
 
 長年、自然状態での本種の越冬態を追い求めてきましたが、個人的にやっと確認できたという喜びよりも、やっと終わったかという気持ちが正直あります。

これまでの観察から、以下のことが明らかになったと思います。
1 標高250m、北緯37度20分21秒、東経140度19分23秒 付近の越冬地での越冬時期は12 
  月15日前後である(ほとんどの個体が越冬状態になる時期)。
2 新成虫が現れる6月下旬から7月中旬以降、越冬地となる地域の個体数は次第に増加する。
3 成虫は夜間樹上には上がらず、地表近くのイネ科植物や樹高の低い灌木の枝で夜を明か
 す。
4 越冬期前には夜間や、気温が10℃以下の日中は越冬地近くの植物の根際10~20cmの位
  置に定位することが多く、気温が高ければ盛んに活動して摂食を行う。
5 11月には晴れて、気温が10℃以上でも活動は14時半には終了して、夜に備える。
6 越冬直前には越冬場所となる倒木や朽木周辺に集まり、飛来ー離脱を繰り返すようにな 
 る。この場合、多くの個体が朽木の隙間や穴に入っては、すぐに出て来るなどの行動が見
 られた。
7 越冬は飛来した個体が歩いて朽木の隙間に躊躇なくすぐに入る。飛来は昼前後に見ら
 れる。越冬場所は朽木の木質部深く、表皮から数cmの深さである。穿孔性昆虫が穿
 った食孔内部を歩いて、深い位置にたどり着くものと思われた。


2024年1月24日水曜日

生態学の理論を実証するアオモンイトトンボ(1)

夏井川のムスジイトトンボ
  夏井川は阿高地の最高峰大滝根山の南西麓を源頭とし、田村市、小野町そしていわき市を流れる2級河川(福島県内の浜通りに限って流れる)です。いわき市市街地を流れる夏井川は川幅や堤防も広く、てっきり1級河川だとばかり思いこんでいました。この流域には現在ここでしか見れないキイロサナエ、ナゴヤサナエおよびキイロヤマトンボが生息し、他にも県内では暖地性のアオモンやムスジなどのイトトンボ類が多く、トンボ屋にとっても外せない河川となっています。
 今回は夏井川河口付近のトンボを紹介します。ただここは海に近く、潮の干満の差が大きく、川の中を歩いている場合注意しないと戻れなくなる時があるので、満潮時間には注意が必要です。
 さて、河口の公園から川に入ると、名前は良く分からないのですが、オオカナダモのような藻の大群落になっていて、ここに多数のイトトンボが見られます。まず、早速ムスジイトトンボの♂が出迎えてくれます。このトンボは現在相馬市、いわき市、矢吹町さらに白河市(未発表)から知られていて、決して生息地は多くありません。最近は近畿・東海地方内陸部さらに関東北部の内陸部へ分布が広がっているようで、温暖化の影響を指摘する人も多いようです。白河市や矢吹町など福島県でも同様な理由で内陸部への分布拡大が起きているのかも知れません。ただ、生息地としてはどんな池沼でも良いというわけではなく、その条件に産卵基質となるオオカナダモやコカナダモさらにアオミドロなどの水中植物や藻類が繁茂していることがあげられます。夏井川河口では多産するセスジイトトンボと混生しますが、個体数は少なく、1/5ぐらいの比率だと思います。
                    
                  河口ではベンンケイガニがちょっかいを出してくるから油断できない
                           
                個体数は少なく、多産するセスジイトトンボと紛らわしい
                     
      水面の植物に器用に止まって交尾するムスジイトトンボ、ここでは水面に降りて交尾するのが多い
      
      ムスジの産卵のはずが、どこで入れ替わったのかいつのまにかセスジに


(1)アオモンイトトンボの遺伝的多様性
 夏井川でもう1つ目につくトンボにアオモンイトトンボがあります。アオモンイトトンボはムスジイトトンボより、より浜通り地方に分布が限られるトンボで、まだ福島県内陸部での生息が確認された例はなかったと思います(調査不足だとも思いますが)。「日本のトンボ」を見る限り東北地方の北限は宮城県の石巻市・気仙沼市あたりになっています。古く「宮城県のトンボ」では1969年の記録で石巻市富士沼がありますから、当時から分布が北上している気配はありません。暖地性のアオモンイトトンボの分布が近年の温暖化にもかかわらず大挙して北上しないのはなぜか、何が作用してその種はそれ以上北上しないのか?
 
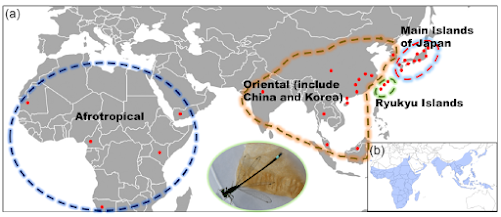
 ところで、アオモンイトトンボは広くアフリカから中東、南アジア、東南アジアそして東アジアと極めて広大な地域に分布しています(津田, 2000)。てっきりいくつかの亜種にでもわかれていると思っていましたが、今のところ Ischnura senegalensis のみのようです。 
 しかし、このほど中国の Bin Jiangら(2023) が世界各地のアオモンイトトンボにおけるミトコンドリアDNAのハプロタイプ*を調べたところ、大きく4つのグループに分けられると報告しました(ミトコンドリアDNAのハプロタイプ分析は同一種内における地域個体群の遺伝的分化(多様性)の解析に広く用いられる手法だそうです)。

    
       ミトコンドリアDNAのハプロタイプからみたアオモンイトトンボのグルーピング
                             Bin Jiang et al., (2023)より

 詳しく見てみます。世界各地約500個体を調べると51個の異なった塩基配列(ハプロタイプ)が検出できたそうです(下のハプロタイプネットワークを参照)。出現頻度でそれらを見るとアフリカ、アジア、琉球諸島そして日本の4つの大きなグループに分かれることが分かりました。アフリカ地域はハプロタイプHp_1(赤の円)1種類のみでまとまっています。これに対して、最も出現頻度が大きかったアジア大陸部のHp_3には中国・インド・東南アジア・日本等の7地域ごとの多数の塩基が混合したものが見られ、一方、日本と南西諸島(琉球列島)では、日本はただ1つのハプロタイプから成っていて、また南西諸島は大陸からの遺伝子流動を受けず、独自のハプロタイプを有することが明らかになったと報告しています。

                  
                アオモンイトトンボのハプロタイプネットワーク図                  
                      Bin Jiang et al., (2023)より
       左上の色が付いた円は個々の地域を示す。色が付いた円の大きさは個体数(出現頻度)の多さを 
       示し、多ければ大きな円になる。Hap_は分析できたハプロタイプ、直線は類似するハプロタイ 
          プ間をつなぐ、数字入りの○はハプロタイプ間で起きた塩基置換回数. 

 Bin Jiangらは南アジア、東南アジア~中国に最も多くみられるハプロタイプHap_3に注目して、多様性がこれほど高くなった理由は広域に行われている稲作にあると推定しています。アオモンイトトンボはこれら地域の水田地帯に普遍的に生息していて、地域を越えた移動があるためではないかと述べています。一方、アフリカはアジアを繋ぐ地域が広大な乾燥地帯であったり、また海峡であったり地理的な障害がその移動(遺伝子流動)を妨げている可能性があると述べています。さらに、南西諸島・日本では海が遺伝子流動を妨げ、特に南西諸島では地理的な隔離によって独自の遺伝子構造に進化したものと推定しています。
 この研究も、前にハッチョウトンボのところでも述べた、日本のつくばにある農環研ジーンバンクのデータがあったからこそ成り立ったようなもので、彼らは中国国内でアオモントンボを集めたにすぎません。ジーンバンクはまさにその機能を大いに海外の研究者に開放していて、数多くの成果が生まれています。日本の研究者(チョウやコウチュウは結構やってる)でもこうしたグローバルな研究を行う人たちがたくさん出て、海外勢にまけない活動をしてほしいものです。一方的に利用されっぱなしては情けない。もう少し、分類やるにしても、分子生物学的な手法が使えて、知識があるなら、日本人(特にトンボに限って)も国内はもういいから、もっと世界的な視野に立った発想ができないものかと。
                      
                      夏井川で普通に見られる♂型メスとの交尾
             
                     
              獰猛なアオモンのメス、ムスジのペアに襲いかかる
                          
            本来天敵のアメンボを襲って食べるメス、すでに腹部のほとんどは食べられてしまった
                         
                        ♂型メスの産卵
                     
          
       この地域では数が少ない暗褐色のメス

          *ハプロタイプ
                     東京都医学総合研究所ホームページからの図を一部改変 

人の例:父母それぞれ1対ある対立遺伝子の塩基配列をハプロタイプ(父方の場合は赤で指した部分)と呼び、遠縁ほど塩基の組み換えが多くなる

引用文献
Archives of Insect Biochemistry and Physiology, e22015. https://doi.org/10.1002/arch.22015


オオルリボシヤンマの縄張行動 Ⅱ

  もういい加減、オオルリボシヤンマから離れたいというのが本音です。しかし、知れば知るほど不思議なトンボだということに魅かれ、また、ついつい山を越え、正直見たくもない沼へ車を向かわせてしまうのです。  今年はマーキングした♂を目印にこれまで、多分そうじゃないかな あ 、と予想でし...